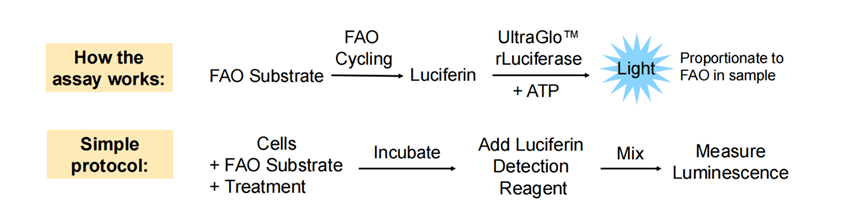
检测信号依赖于探针和细胞浓度
将细胞接种于96孔板中,过夜培养。去除培养基,加入100 μl 含1%BSA的PBS缓冲液配制的FAO底物,孵育2小时。加入100μl检测试剂,在10分钟时读取发光值。
结论:在HEK293和HepG2细胞中,脂肪酸氧化信号随细胞数量和底物浓度的增加而增加,其中20μM底物产生的响应最强。HepG2细胞产生的总信号高于HEK293细胞,这与其肝脏代谢表型一致。
与高通量定量的兼容性
HEK293细胞接种于384孔板中,过夜培养。去除培养基,加入40μl含1% BSA的PBS缓冲液配制的20μM FAO底物,孵育2小时。加入40μl检测试剂,在10分钟时读取发光值。依托莫司使用浓度为20μM。
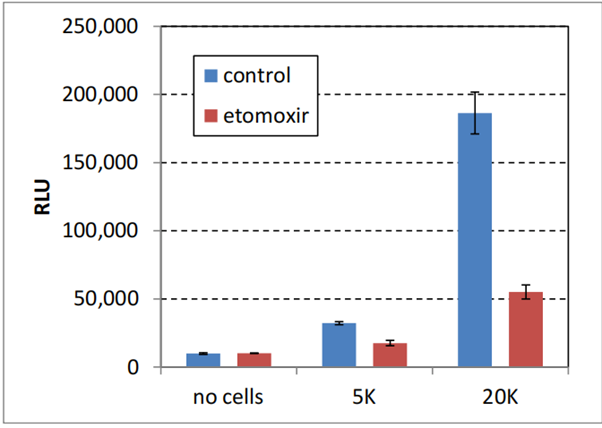
20,000个HEK293细胞接种于96孔板中,过夜培养。去除培养基,加入40μl含1% BSA的PBS缓冲液配制的20μM FAO底物,孵育1.5小时。一半孔中含有20μM依托莫司。加入40μl检测试剂,在10分钟时读取发光值。
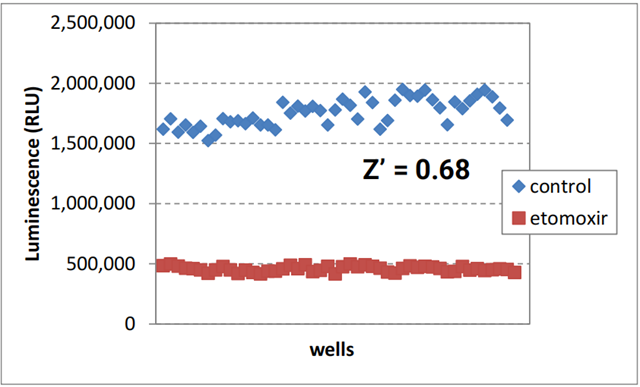
结论:FAO-Glo™检测法可轻松转换至384孔板形式,并具有良好的筛选质量,确认适用于高通量应用。依托莫司在20,000个细胞时使信号降低约4倍,证实了该检测对肉毒碱棕榈酰转移酶I依赖性脂肪酸氧化的特异性。
原代细胞中的脂肪酸氧化
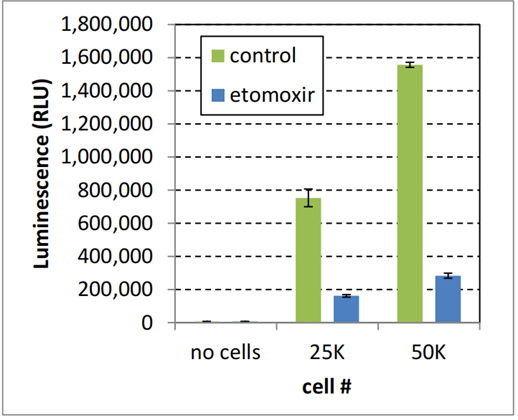
原代人肝细胞在96孔板中接种并孵育48小时,期间在24小时更换培养基。去除培养基,加入100μl含1% BSA的PBS缓冲液配制的20μM FAO底物,孵育1小时。加入100μl检测试剂,在10分钟时读取发光值。依托莫司使用浓度为20μM。
iCell心肌细胞在96孔板中接种并孵育48小时。去除培养基,加入100μl含1% BSA的PBS缓冲液配制的FAO底物,孵育1或2小时。加入100μl检测试剂,在10分钟时读取发光值。
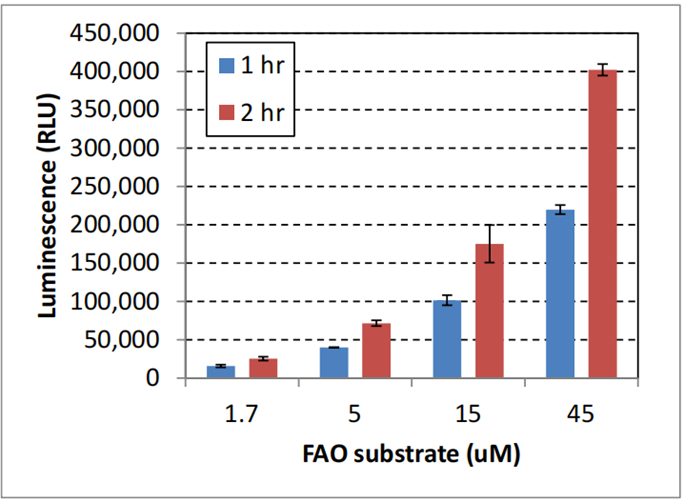
结论:FAO-Glo™检测法在原代人肝细胞和iPSC来源的心肌细胞中均检测到稳健的脂肪酸氧化活性。肝细胞的信号与细胞数量成正比,并被依托莫司降低约5倍。在iCell心肌细胞中,信号随底物浓度和孵育时间的增加而增加,证明了该检测法在原代细胞模型间的灵活性。
化合物处理和多重检测
原代人心肌细胞(20k)在96孔板中接种并孵育24小时。去除培养基,加入100μl含1% BSA的PBS缓冲液配制的20μM FAO底物(添加或不添加不同化合物),孵育2小时。
2-脱氧葡萄糖(2DG)=10μM,抗霉素A (antA)=1μM,依托莫司(eto)=20μM。
从同一块板中依次读取FAO-Glo™ 和CellTiter-Glo®2.0检测结果。在另一块重复板上对CellTiter-Fluor™和RealTime-Glo™进行多重检测。
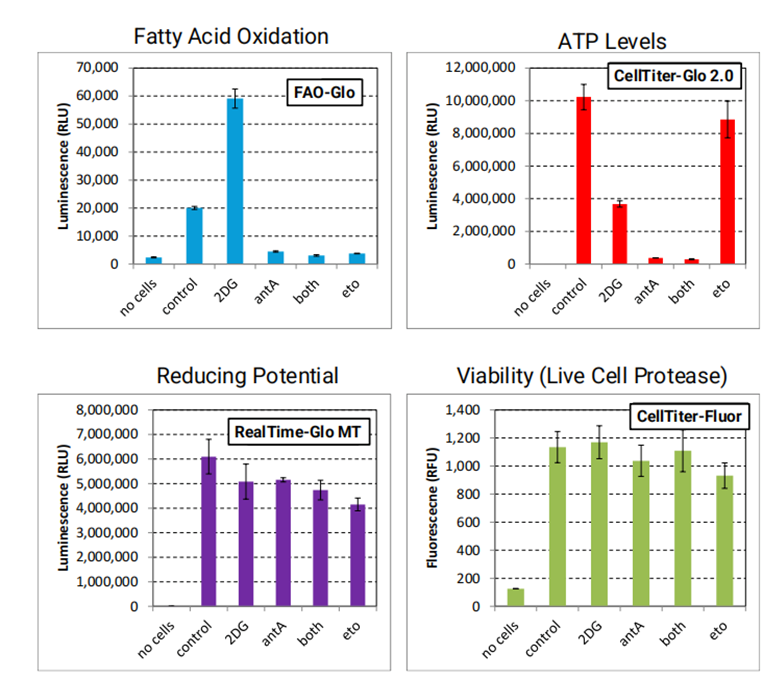
● 2DG导致脂肪酸氧化增加,而antA和依托莫司均导致其降低。
● 2DG和antA均降低ATP水平,但依托莫司影响甚微。
● 所有3种化合物对细胞还原能力或细胞活力的影响都很小。
结论:FAO-Glo™可以从同一孔中测量脂肪酸氧化、ATP、活力和还原能力,从而实现多重代谢分析。化合物处理产生的响应与其作用机制一致:2-DG(糖酵解抑制剂)将代谢转向脂肪酸氧化,而线粒体抑制剂(antA和依托莫司)在测试浓度下降低脂肪酸氧化但不影响细胞活力。